
业务咨询

大脑衰老的“时间折叠”:斑马鱼如何把一条因果链压缩进几个月
大脑衰老最棘手的问题,从来不是“老了会怎样”,而是“谁先动手”。端粒缩短、细胞衰老、神经炎症、血脑屏障渗漏,在人类身上几乎总是同时出现,因果方向因此被时间掩埋。2025年发表于 Aging Cell 的一项研究,用一种端粒酶缺失的斑马鱼模型,把这些事件在时间轴上重新拆开,让一条从转录组失调到行为改变的因果链,在活体、可观测的尺度上同时展开。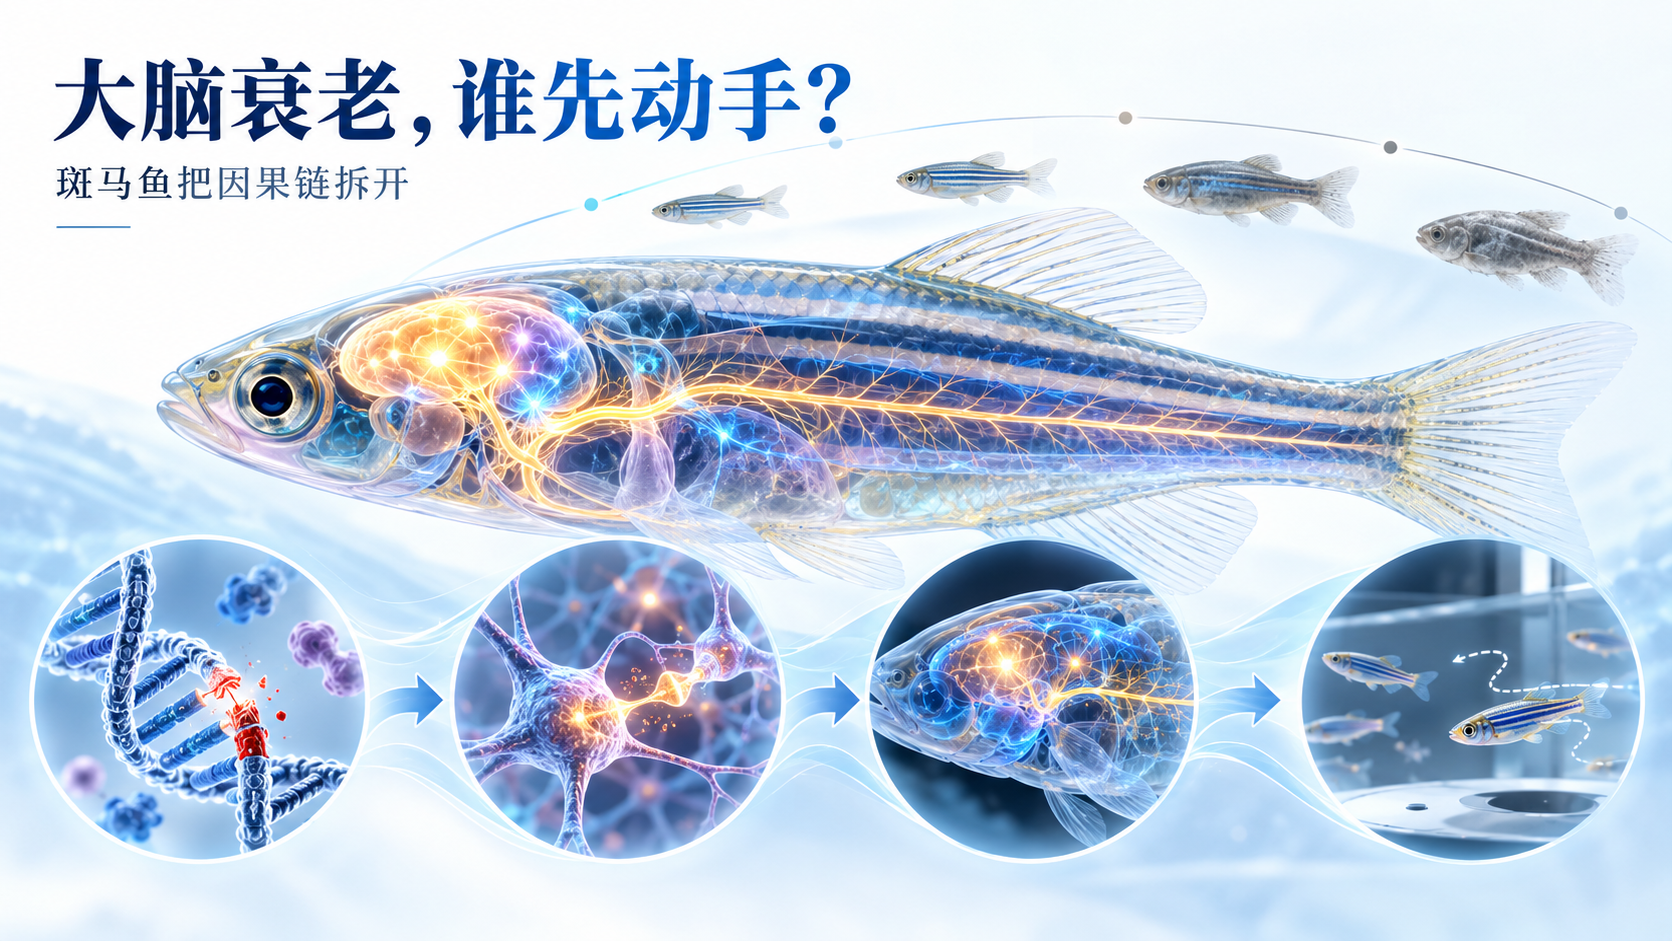
一、同一套衰老标志,被压缩进不同的时间窗口
野生型斑马鱼的自然衰老进程与人类存在保守性:衰老细胞标志物SA-β-Gal在30—36个月龄的脑中显著累积,DNA损伤应答标志γH2AX也在同一阶段升高。端粒酶缺失(tert⁻/⁻)斑马鱼则呈现出一种可预测的“时间折叠”:早在2—6个月龄,间脑和视顶盖的SA-β-Gal阳性信号就已经达到野生型老年鱼的水平;到9—16个月龄,γH2AX标记的DNA损伤焦点显著增加——而这些变化在野生型中要等到30—36个月才出现。
耐人寻味的是,并非所有衰老标志都以同样的节奏被加速。增殖细胞在野生型和tert⁻/⁻鱼中随年龄下降的幅度相近,端粒酶缺失并未加速这一下降;细胞周期抑制因子p16(cdkn2a/b)的表达在tert⁻/⁻鱼中9—16个月龄即已显著升高,而SA-β-Gal的提前则更早,落在2—6个月龄的窗口内。这意味着“端粒酶缺失加速衰老”不是一个笼统的判断,而是一组标志物以不同速度、在不同脑区先后亮起的时序事件。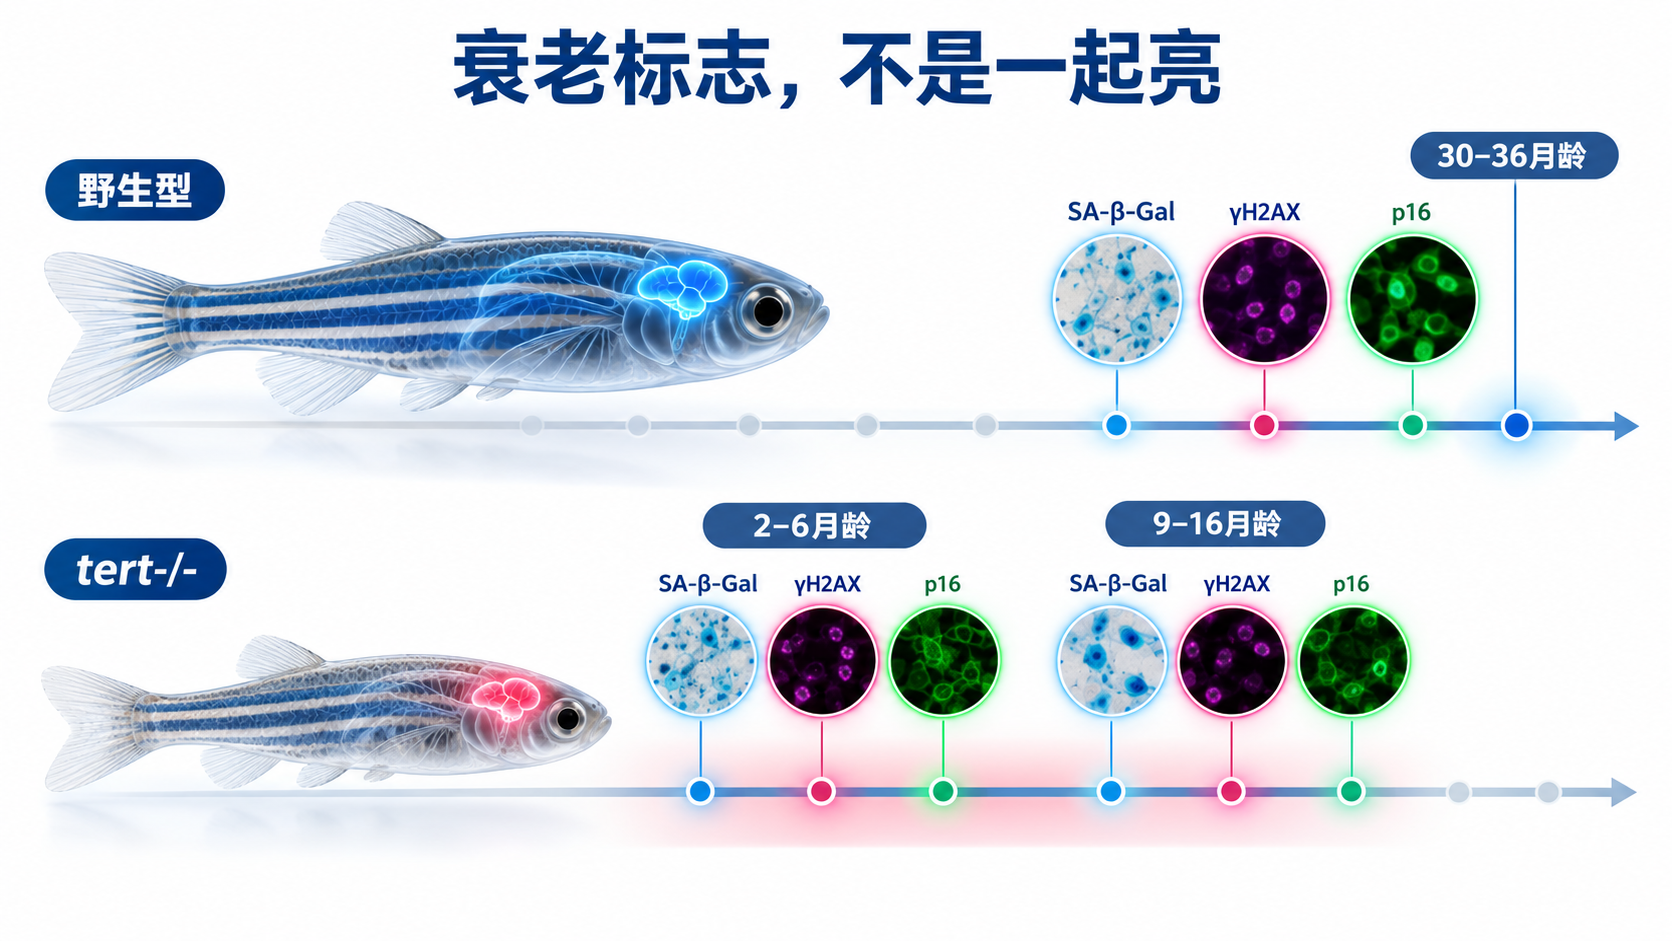
二、从“建设模式”切换到“炎症模式”:转录组层面的因果线索
在转录组层面,野生型斑马鱼大脑衰老呈现出一个稳定的方向性转变:免疫反应通路持续上调,细胞周期、DNA复制、染色质组织相关通路持续下调。单细胞数据的富集分析进一步指向细胞类型的偏移——增殖细胞、神经前体细胞、少突胶质细胞相关基因下调,而小胶质细胞/白细胞相关基因上调。换言之,大脑在衰老过程中正在从“建设模式”向“炎症模式”切换。
tert⁻/⁻斑马鱼的关键价值在于,这一切换被提前了。在1049个与野生型老年脑相关的差异基因中,约36%在端粒酶缺失鱼中提前表达;一批在野生型30—36个月才出现的转录变化,在tert⁻/⁻鱼中9—16个月就开始加速。这提供了一个在自然衰老背景下难以获得的观察窗口:端粒酶不足先改变了应激反应和免疫基因的表达格局,随后才是衰老标志物的原位累积和DNA损伤的可见升高。
三、血脑屏障与行为:把分子事件接到“活着的老去”上
如果文章止步于转录组和染色标志物,它仍然只是一个更快的“衰老检测器”。这项研究的真正张力在于,它把这些细胞层面的加速,与两个活体功能读出接上了线。
在tert⁻/⁻斑马鱼中,衰老标志物和神经炎症的加速,伴随着血脑屏障通透性升高和焦虑样行为增加。血脑屏障不是被动屏障,它的完整性依赖于包括端粒酶在内的多重保护机制;当端粒酶不足时,屏障功能的失守与神经炎症的累积在时间上重合,而焦虑样行为则成为这一连串事件在整体动物层面的行为表达。这条链条的价值不在于证明“端粒酶决定焦虑”,而在于它展示了一种在传统模型中难以实现的多层级同步观测:同一个动物体内,转录组的变化、衰老细胞的累积、屏障的渗漏和行为的偏移,可以在几个月内被串接起来,而不是在数年跨度中被推测。
四、一个尚未闭合的机制缺口:端粒酶在端粒之外做了什么
这项研究最值得认真对待的推论,恰恰来自一个“不符合预期”的发现:衰老标志物的加速不仅出现在预期的增殖区域,也出现在非增殖区域,而在非增殖区域,端粒依赖性复制性耗竭很难解释衰老标志物的提前累积。这指向端粒酶的非经典功能——抗氧化、抗炎、线粒体保护等不依赖于端粒延长的保护作用,可能在维持大脑免于衰老相关标志物累积和神经炎症中独立发挥作用。
这并不意味着端粒缩短不再重要,而是意味着端粒酶缺失所触发的事件序列,不能全部被还原为“端粒短了,细胞老了”。对于神经退行性疾病研究而言,这一区分具有实际后果:如果端粒酶的保护作用有一部分独立于端粒长度,那么以端粒为唯一读出指标的干预策略,可能会漏掉一个平行的、以炎症和屏障完整性为靶点的机制空间。
结语
斑马鱼在这个故事里的角色,不是“比小鼠更快的小鼠”,也不是“比细胞更复杂的细胞”。它提供的是一个稀缺的时间分辨率:在同一个活体脊椎动物身上,让转录组层面的模式切换、细胞层面的衰老标志物累积、组织层面的屏障渗漏和行为层面的偏移,在几个月而不是数年的时间窗口内先后发生、可被逐一观测。大脑衰老的因果链不会因为斑马鱼而变得简单,但它第一次变得可以被“看见”在哪个节点先亮起来。
